Après Varroa, faut-il redouter Tropilaelaps ?
Les apiculteurs belges composent déjà avec Varroa destructor. Un second acarien pourrait bientôt s’ajouter. Découvrez-en plus dans cet article.
Contexte et enjeux
Les apiculteurs composent déjà avec un parasite bien établi : Varroa destructor. Les perspectives ne sont pas particulièrement rassurantes, puisqu’un second acarien pourrait prochainement s’ajouter à cette pression : Tropilaelaps mercedesae.
Sans vouloir annoncer de mauvaises nouvelles, ce parasite représente une menace émergente pour Apis mellifera. Bien que le genre Tropilaelaps regroupe plusieurs espèces, c’est principalement T. mercedesae qui est concerné.
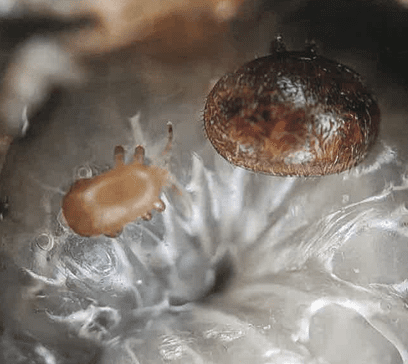
Plus petit que le varroa, avec un corps allongé brun clair et une grande mobilité, il atteint à peine un millimètre (Fig. 1). Cette mobilité rend sa détection difficile. De plus, son taux de reproduction élevé laisse suggérer des dynamiques d’infestation rapides et potentiellement difficiles à contenir.
À l’origine, T. mercedesae est associé aux abeilles asiatiques. Toutefois, à l’instar de V. destructor, il est capable d’infester d’autres espèces, notamment A. mellifera. Longtemps restreint à certaines régions d’Asie, ce parasite montre aujourd’hui des signes d’extension. Il a notamment été détecté en juillet 2026 à la frontière entre la Géorgie et la Turquie.
Biologie du cycle de reproduction
Son cycle de reproduction est étroitement lié au couvain des abeilles. La femelle fondatrice s’introduit dans une cellule de couvain peu avant son operculation et y initie la ponte après fermeture. Le développement des descendants s’y déroule ensuite de manière continue, permettant une maturation rapide avant l’émergence de l’abeille hôte. En effet, le nombre de descendants produits par cellule de couvain est plus élevé chez T. mercedesae que chez V. destructor.
De plus, les femelles émergentes sont rapidement aptes à initier un nouveau cycle reproducteur. Son cycle rapide combiné à une phase limitée sur les abeilles adultes favorise une dynamique de population élevée au sein des colonies infestées.
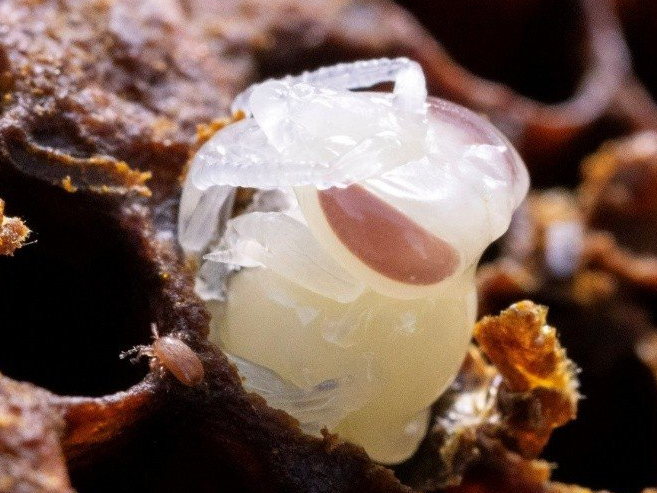
Malgré sa courte phase de phorésie (Fig. 2), T. mercedesae peut être transporté entre colonies via les abeilles adultes mais sa dispersion est principalement liée aux activités apicoles. Dans ce contexte, une vigilance accrue et des pratiques apicoles adaptées sont essentielles afin de limiter sa propagation.
Effets du parasitisme sur la colonie
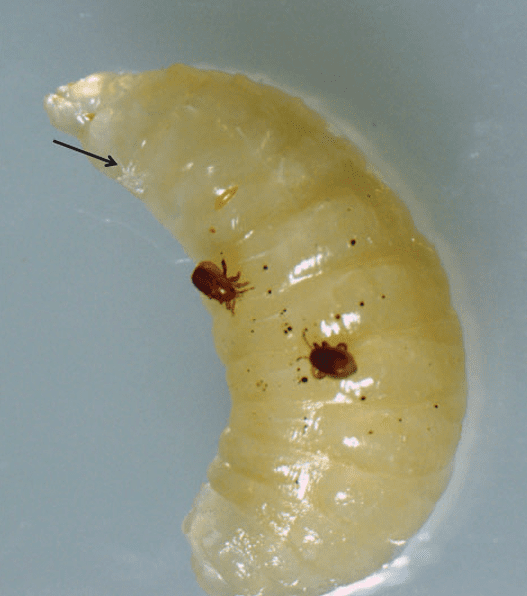
Son mode d’alimentation induit des dommages au niveau du couvain, notamment par la création de lésions sur les abeilles en développement. Ces atteintes peuvent affaiblir fortement les individus et compromettre leur développement (Fig. 3).
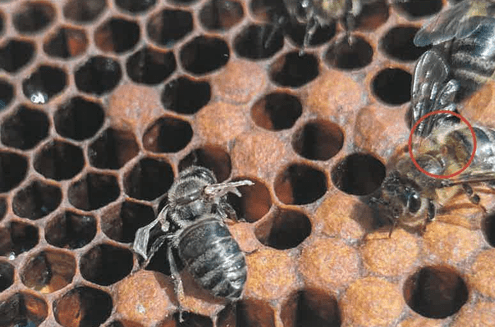
Les lésions provoquées peuvent également faciliter l’entrée de pathogènes viraux, notamment le Deformed Wing Virus, bien connu en apiculture. Les individus émergents sont alors souvent plus petits, plus légers et présentent une longévité réduite, avec parfois des malformations visibles des ailes (Fig. 4).
Ces effets se traduisent par un affaiblissement progressif des populations et une organisation du couvain hétérogène ou irrégulière, accompagné d’une diminution des performances des ouvrières. Ces symptômes sont globalement similaires à ceux observés lors d’infestations par V. destructor, mais ils apparaissent ici de manière plus marqués et sévères.
Méthode de détection
La détection précoce de T. mercedesae est essentielle, d’autant plus que plusieurs espèces d’acariens peuvent être présentes simultanément dans les colonies. Une bonne connaissance des méthodes d’identification est donc importante pour un suivi efficace.
Les approches utilisées sont en grande partie adaptées de celles développées pour V. destructor. Les méthodes basées sur les abeilles adultes permettent de détecter la présence du parasite, mais restent limitées en raison de la courte phase de phorésie sur les adultes. Les méthodes centrées sur le couvain sont plus informatives. Elles incluent l’ouverture des cellules ou des techniques d’observation rapide de larges surfaces de couvain. Ces approches offrent une meilleure sensibilité pour le suivi des infestations en colonie.
Stratégies de gestion
Concernant sa gestion, différentes approches peuvent être envisagées, combinant méthodes biotechnologiques et traitements. Les techniques biotechnologiques, visant notamment à interrompre temporairement le cycle de reproduction de la reine ou à cibler le couvain, peuvent contribuer à limiter le développement des populations d’acariens.
À l’heure actuelle, certains traitements comme l’acide formique semblent mieux atteindre les acariens au sein du couvain, mais leur utilisation reste contraignante et demande une gestion rigoureuse. Un contrôle efficace pourrait nécessiter une surveillance et des interventions régulières au cours de la saison apicole.
Focus sur les comportements de résistance
Des différences marquées existent entre espèces d’abeilles dans leur capacité à éliminer les acariens au stade phorétique. Chez Apis cerana, la survie de T. mercedesae est réduite, en partie grâce à un toilettage efficace. À l’inverse, chez A. mellifera, ce comportement est présent mais moins performants. Cette différence contribue à une résistance globale plus élevée chez les abeilles asiatiques, tandis que A. mellifera apparaît plus vulnérable.
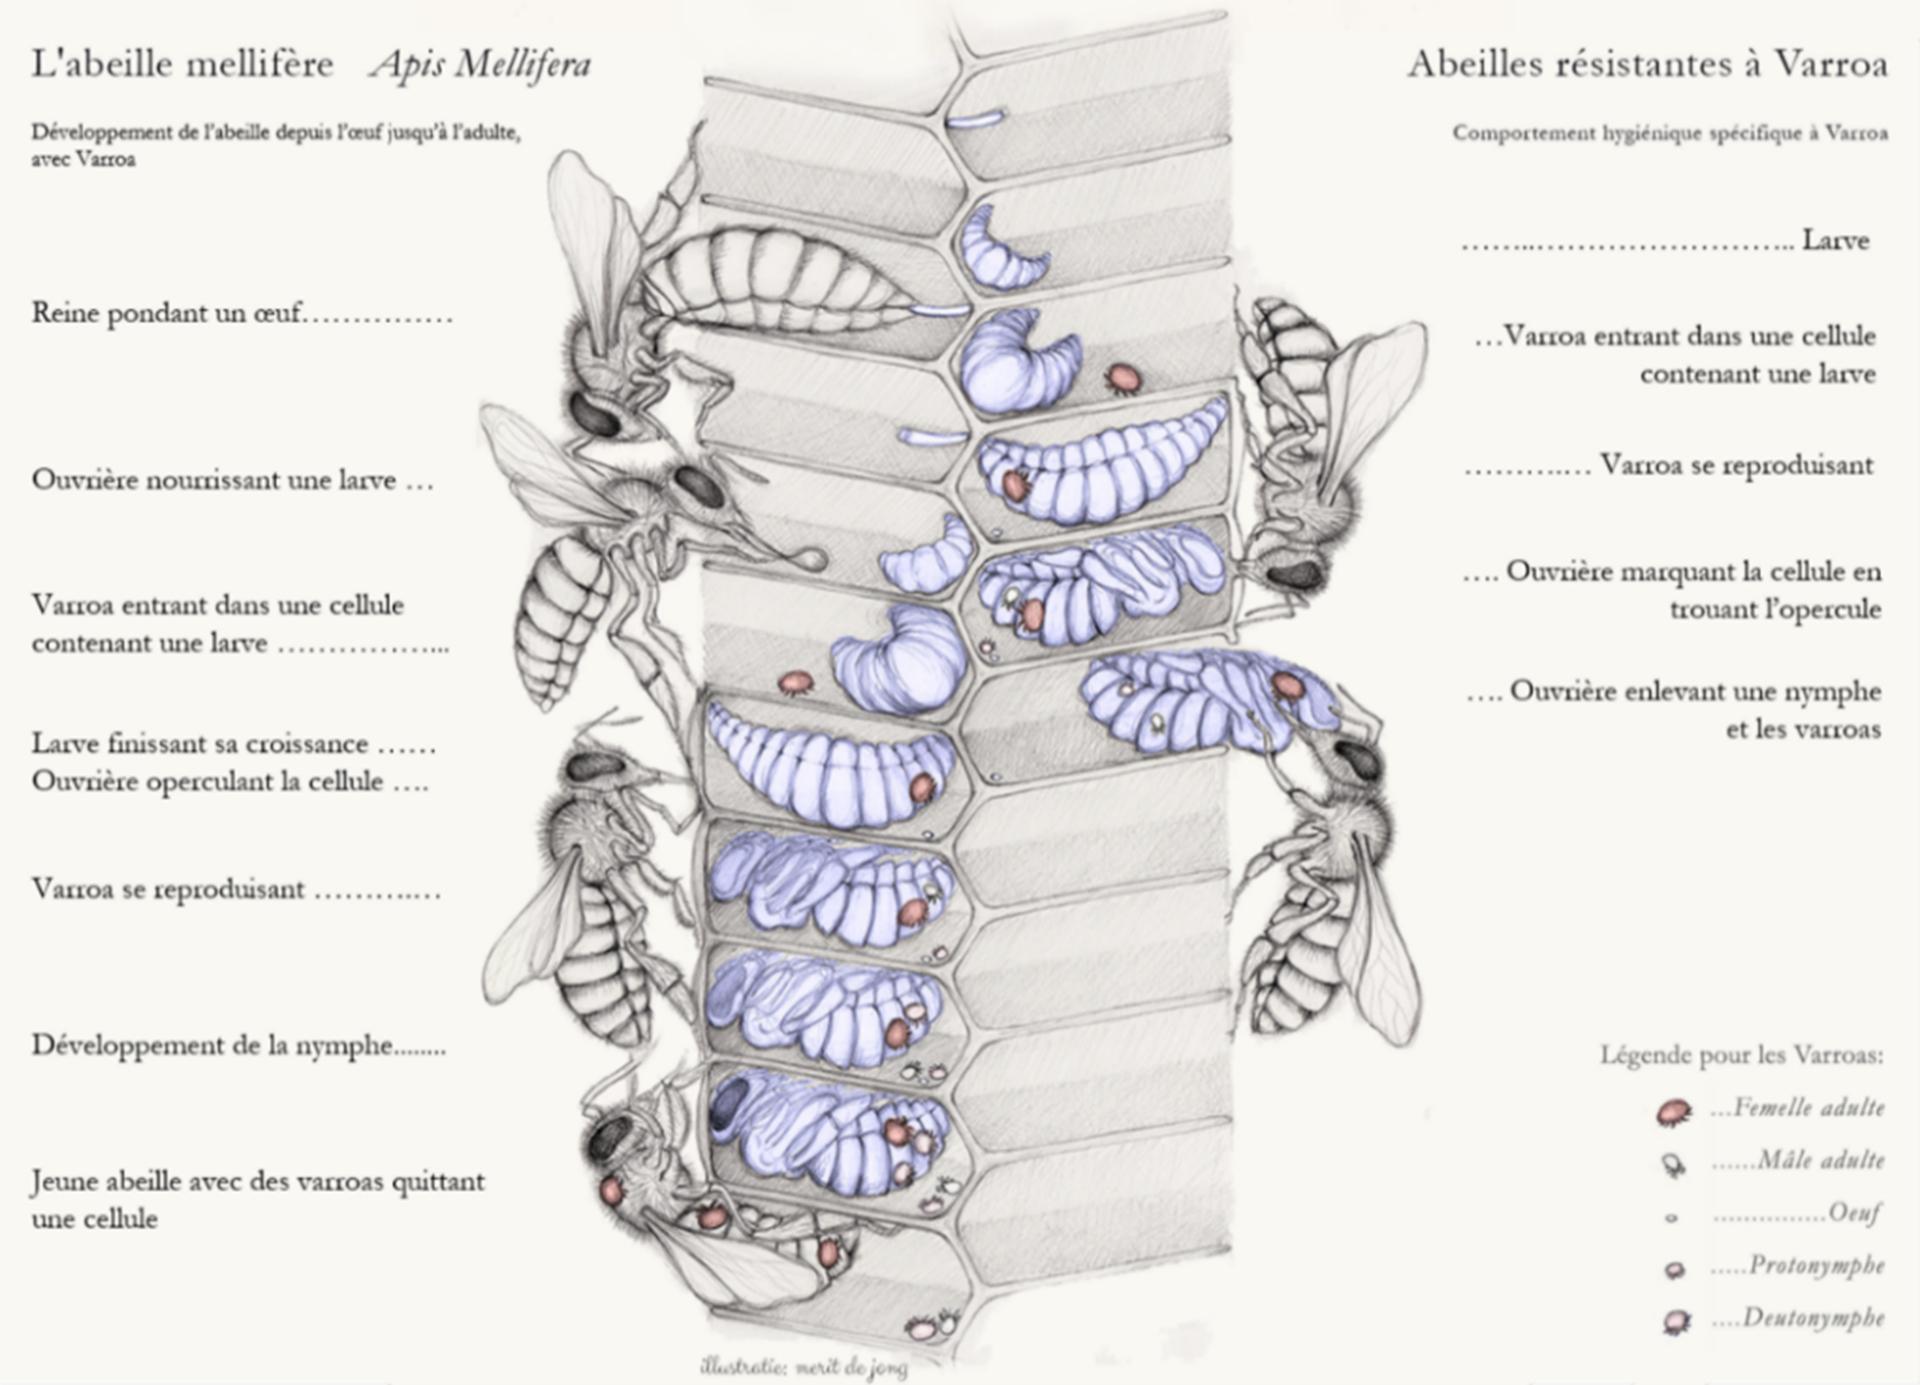
Par ailleurs, l’élimination du couvain infesté correspond au comportement « Varroa Sensitive Hygiene » (VSH) (Fig. 5), qui repose sur la capacité des ouvrières à détecter, désoperculer puis retirer les pupes parasitées, interrompant ainsi le cycle reproducteur des acariens.
Chez A. cerana, ce comportement est particulièrement efficace, avec des taux élevés d’élimination du couvain, ce qui limite fortement la reproduction de V. destructor mais aussi de T. mercedesae. Les infestations pourraient être plus létales pour les pupes générant des signaux de retrait plus forts, ou encore la réplication virale induite par l’alimentation du parasite pourrait faciliter la détection du couvain infesté.
Une étude menée en Thaïlande a mis en évidence le rôle du comportement hygiénique dans la résistance d’A. mellifera face à T. mercedesae. Ils ont observé de hauts taux d’élimination de couvain artificiellement infesté. Ces résultats suggèrent que les populations thaïlandaises d’A. mellifera ont pu développer progressivement une résistance comportementale après plusieurs décennies d’exposition, bien que moins efficaces qu’A. cerana. D’après une autre étude menée au Nepal, dans les colonies fortement hygiéniques, la reconnaissance et l’élimination du couvain constituent une spécialisation comportementale exprimée uniquement par une petite minorité d’ouvrières. En effet, les cellules infestées par V. destructor et T. mercedesae sont souvent ouvertes par les mêmes individus spécialisés. Cela suggère une association étroite entre ces deux comportements, indiquant qu’il pourrait s’agir d’un mécanisme de résistance plus général contre les acariens.
D’importants efforts sont déployés pour augmenter la fréquence du comportement hygiénique dans les populations d’A. mellifera dans de nombreuses régions du monde. Des programmes de sélection, notamment menés par Arista Bee Research Belgium, ont fait du VSH un axe central. S’il peut effectivement être démontré que le comportement hygiénique dirigé contre V. destructor et contre T. mercedesae correspond au même trait, ou au moins à des traits étroitement liés, cela signifierait que la sélection pour la résistance à V. destructor constitue également une stratégie préventive face à une introduction de T. mercedesae. Dans cette perspective, Arista Bee Research Belgium prévoit d’explorer cette hypothèse.
Conclusion
Bien que T. mercedesae ne soit pas encore présent en Europe, il constitue une menace à anticiper. La sensibilisation et la formation des apiculteurs sont essentielles pour permettre une détection précoce et une réaction rapide.
Dans un contexte d’expansion potentielle, le comportement hygénique apparaît donc comme un levier majeur pour améliorer la résilience des colonies, en complément d’autres stratégies de lutte adaptées.
Pour des informations plus détaillées et complètes, vous pouvez consulter notre article paru dans la Revue de l’Apiculture en 2026.
Références
Buawangpong, N., De Guzman, L. I., Khongphinitbunjong, K., Frake, A. M., Burgett, M. D., & Chantawannakul, P. (2015). Prevalence and reproduction of Tropilaelaps mercedesae and Varroa destructor in concurrently infested Apis mellifera colonies. Apidologie, 46(6), 779–786. https://doi.org/10.1007/s13592-015-0368-8
De Guzman, L. I., Williams, G. R., Khongphinitbunjong, K., & Chantawannakul, P. (2017). Ecology, life history, and management of Tropilaelaps mites. Journal of Economic Entomology, 110(2), 319–332. https://doi.org/10.1093/jee/tow304
Gill, M. C., Chuttong, B., Davies, P., Earl, A., Tonge, G., & Etheridge, D. (2025). In vitro assessment of Tropilaelaps mercedesae survival across different substrates. Apis, 2(2), 24–29. https://doi.org/10.62949/02634299.0581119
Gill, M. C., Chuttong, B., Davies, P., Etheridge, D., Panyaraksa, L., Tomkies, V., Tonge, G., & Budge, G. E. (2024). Assessment of the efficacy of field and laboratory methods for the detection of Tropilaelaps spp. PLOS ONE, 19(9), e0301880. https://doi.org/10.1371/journal.pone.0301880
Gill, M. C., Uzunov, A., Janashia, I., & Kovačić, M. (2025). Tropilaelaps: At the gate of your apiary – Tropilaelaps mercedesae: Biology, pathology, detection and control. Bee & Honey. https://www.thorne.co.uk/books-education-gifts/books-magazines/uk-books/tropilaelaps-book.html
Gill, R. J., Koeniger, N., & Muzaffar, M. (2024). Survival and phoretic behavior of Tropilaelaps mercedesae on adult honey bees and decomposing brood. Journal of Apicultural Research, 63(5), 389–402. https://doi.org/10.1080/00218839.2024.1199652
Janashia, I., Uzunov, A., Chen, C., Costa, C., & Cilia, G. (2024). First report on Tropilaelaps mercedesae presence in Georgia: The mite is heading westward. Journal of Apicultural Science, 68(2), 183–188. https://doi.org/10.2478/jas-2024-0010
Khongphinitbunjong, K., De Guzman, L. I., Buawangpong, N., Rinderer, T. E., Frake, A. M., & Chantawannakul, P. (2014). Observations on the removal of brood inoculated with Tropilaelaps mercedesae (Acari: Laelapidae) and the mite’s reproductive success in Apis mellifera colonies. Experimental and Applied Acarology, 62(1), 47–55. https://doi.org/10.1007/s10493-013-9728-0
Khongphinitbunjong, K., De Guzman, L. I., Burgett, M. D., Rinderer, T. E., & Chantawannakul, P. (2012). Behavioural responses underpinning resistance and susceptibility of honeybees to Tropilaelaps mercedesae. Apidologie, 43(5), 590–599. https://doi.org/10.1007/s13592-012-0129-x
Khongphinitbunjong, K., Neumann, P., Chantawannakul, P., & Williams, G. R. (2016). The ectoparasitic mite Tropilaelaps mercedesae reduces western honey bee (Apis mellifera) longevity and emergence weight and promotes Deformed Wing Virus infections. Journal of Invertebrate Pathology, 137, 38–42. https://doi.org/10.1016/j.jip.2016.04.006
Shrestha, R., et al. (2020). Hygienic behavior in Apis cerana and Apis mellifera against Tropilaelaps mercedesae and Varroa destructor. Journal of Invertebrate Pathology, 173, 107374. https://doi.org/10.1016/j.jip.2020.107374
Uzunov, A., Janashia, I., Chen, C., Costa, C., & Kovačić, M. (2025). Rapid brood decapping: A method for assessing honey bee brood infestation with Tropilaelaps mercedesae. Apidologie, 56(2), 1–6. https://doi.org/10.1007/s13592-025-00891-4
Uzunov, A., Tokach, M., & Gill, R. J. (2025). Infestation dynamics of Tropilaelaps mercedesae in honey bee colonies: Prevalence and reproductive success. Experimental and Applied Acarology, 87(2), 215–230. https://doi.org/10.1007/s10493-025-01092-3